Hola soy Sebastián justi soy uno de los docentes encargados de las clases virtuales de biología molecular y genética la idea de estas clases es acompañarlos a lo largo de los temas teóricos de la materia y facilitarles la lectura de la bibliografía contextualiza también me gustaría recordarles que nuestra cátedra ofrece clases de discusión eh de temas teóricos y clases de consultas que son actividades optativas y presenciales aprovecho a desearles una buena cursada y que disfruten la materia para iniciar esta clase vamos a iniciar trayendo dos ejemplos de procesos fisiológicos en donde La regulación de la expresión
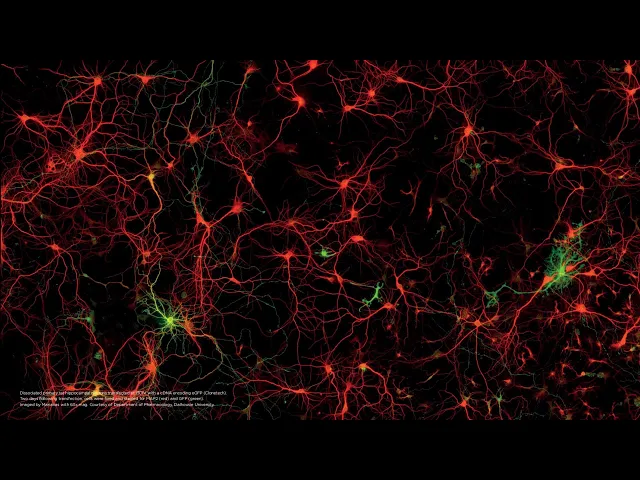
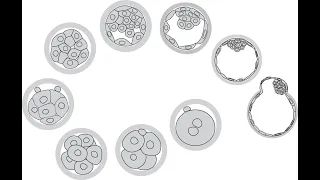
génica se pone de manifiesto con el fin de comprender más profundamente este concepto el primero de los ejemplos se da en el contexto del desarrollo allí lo que podemos notar es que una única célula producto de la fecundación la cigota se multiplica mitóticamente en miles de millones de células que a través de distintos procesos como interacciones celulares procesos de señalización y de migración van constituyendo el organismo adulto y un aspecto que me gustaría subrayar es que a lo largo de este proceso estas células derivadas mitóticamente de la zigota y que comparten el mismo genoma van
adquiriendo distintas especializaciones morfológicas bioquímicas y funcionales en un proceso que denominamos diferenciación celular así por ejemplo en un Organo mismo adulto tenemos células que difieren enormemente en los tipos de especializaciones que poseen Por ejemplo si comparamos una neurona con un hepatocito a pesar de que estas dos células poseen el mismo genoma son morfológicamente y bioquímicamente y funcionalmente muy distintas una de la otra distintas técnicas de biología molecular a lo largo de las últimas décadas permitieron comprobar que tanto la neurona como el hepatocito contienen ARN mensajeros diferentes entre sí por ejemplo a pesar de que ambas
células comparten el mismo genoma el tipo de transcriptos que derivan de ese genoma es diferencial En estos casos una neurona por ejemplo expresa genes como genes particulares de suo esqueleto genes de neurofilamentos y otros genes como psd 95 y b glut 1 que participan de la conformación de la sinapsis en tanto que en el hepatocito se expresan genes que no están expresados en las neuronas como los genes de las proteínas plasmáticas de la albúmina y la transferrina o la enzima alcohol deshidrogenasa que permite la detoxificación por el alcohol por parte de este tipo celular más
allá de estos genes que se expresan de manera diferencial también hay un subconjunto de genes que se expresan de manera simultánea tanto en neuronas como en hepatocitos a estos genes usualmente los llamamos genes housekeeping o genes constitutivos y permiten eh el funcionamiento básico de estructuras y procesos celulares eh compartidos como proteínas del citoesqueleto o proteínas que regulan la compactación de la cromatina como las cistas en resumen podemos decir que estas distintas especializaciones que encontramos como efecto del proceso de diferenciación responden al hecho de que a pesar de que las células tienen el mismo genoma se
expresan en cada uno de estos tipos celulares distintos subconjuntos distintos del genoma La pregunta sería Entonces ahora cuáles son los mecanismos que permiten explicar por qué en un tipo celular se expresan ciertos genes y en otro tipo celular se expresa un subconjunto distinto esa es una de las preguntas que vamos a intentar contestar a lo largo de esta clase otro ejemplo fisiológico que me gustaría eh traer para pensar en los procesos de regulación de la expresión génica se da en la respuesta celular ante estímulos agudos o de corto plazo es decir modificaciones en la expresión
génica que se dan en lapsos de tiempo más cortos pensemos por ejemplo en las células secretoras que forman parte de las glándulas tubolar en el tejido mamario en una mujer embarazada hacia fines del embarazo bajo el estulo de la hormona prolactina estas células comienzan a expresar genes que antes del estímulo de la prolactina no expresaban genes como el de la beta caseína y de la Alfa lactalbumin que forman parte de la leche materna Entonces si comparamos la expresión de los genes antes y después de la inducción de la hormona prolactina también notamos un cambio en
la expresión génica estos dos ejemplos que vimos el proceso de diferenciación celular y el proceso de respuesta celular ante estímulos agudos de corto plazo son dos ejemplos en donde hay una expresión génica diferencial y nos permite hacernos la pregunta acerca de cuáles son los mecanismos moleculares que permiten la expresión diferencial de genes antes de abordar la respuesta a esta pregunta eh de manera directa me gustaría traer algunos conceptos que nos permiten entender mejor A qué nos referimos con el concepto de expresión génica antes de entender su regulación para entender a qué nos referimos con la
expresión de un gen debemos considerar que el genoma Humano si consideramos el genoma nuclear Está compuesto por aproximadamente 30,000 genes segmentos de ADN que contienen información para distintos productos funcionales la mayoría de esos genes codifican para proteínas y decimos que un gen que codifica para una proteína se expresa cuando se dan los procesos de transcripción y luego de traducción es decir los procesos que permiten la generación de ese producto funcional cuya información está codificada en la secuencia del ADN tengamos en cuenta que existen genes cuyo producto funcional final no es una proteína sino el ARN
mismo es el producto funcional allí será el proceso de transcripción el proceso que permita la expresión de esos genes ejemplos de genes cuyo producto funcional final es el ARN son por ejemplo los arns de transferencia los ARN ribosomales o arnes largos no codificantes como aquellos que participan en el proceso de inactivación del cromosoma X según veremos más adelante en la cursada podemos distinguir entonces distintos pasos en la expresión GMC que están sujetos a regulación por parte de las células por ejemplo el primer punto de control es el control que permite la producción de un transcripto
primario a partir de la secuencia de ADN y fundamentalmente serán los mecanismos celulares y moleculares que permiten eh regular si este proceso se produce o no para un ger en particular y la velocidad o la frecuencia con la que esto ocurre los procesos en los cual nos concentraremos en la clase de hoy estos mecanismos los podemos distinguir en Dos clases como una regulación pretransitivos de la transcripción misma una vez que este proceso se ha cumplido esta clase tendrá una continuidad conceptual con la clase siguiente en donde otros procesos que permiten la expresión y la estabilidad
de los productos funcionales codificados por estos genes tienen lugar Comencemos analizando La regulación pretres del ADN a la maquinaria de la transcripción es decir que va a procesos que van a permitir que la rn polimerasa 2 la enzima encargada de transcribir Es decir de generar un transcripto primario a partir de las secuencias pueda acceder eh a entrar en contacto con ese molde de ADN y un concepto que debemos comprender es que esta accesibilidad está determinada en gran parte por los distintos grados de compactación de la cromatina el ADN se encuentra asociado a un conjunto de
proteínas fundamentalmente proteínas histonas sobre las cuales el ADN va a enrollarse y se ha podido determinar que en distintos momentos de el estadío celular este grado de compactación de la cromatina es variable siendo el máximo grado de condensación de la cromatina aquel que se refleja durante la fase m del ciclo celular durante la mitosis pero aún durante la interface no todos los sitios del genoma tienen el mismo grado de compactación HM Y esto determinará qué subconjunto de genes será accesible o no a la maquinaria transcripcional así estadíos de la cromatina eh que denominamos laxa o
cromatina abierta serán permitirán el acceso de la maquinaria transcripcional y esas zonas del genoma podrán ser expresadas en tanto que sectores de cromatina cerrada en donde la cromatina tiene alto nivel de compactación impedirán esta transcripción para comprender mejor los mecanismos moleculares que regulan la dinámica de condensación o descondensación local de la cromatina permitiendo o no la expresión de ciertos conjuntos de genes en el genoma conviene analizar la interacción que existe entre el ADN y las siston ya que la formación de los nucleosomas es la unidad estructural de la cromatina cada uno de los nucleosomas está
formado por un octámero de histonas este octámero está compuesto de dos copias de proteínas de histonas de cada clase dos subunidades de histon h2a dos subunidades de histon h2b dos subunidades de histona h3 y dos subunidades de histona h4 aquí representadas en este esquema en donde el ADN que se enrolla eh En este octámero se representa en este color naranja claro me gustaría subrayar aquí que la estructura proteica de las histonas tiene dos características importantes en primer lugar son proteínas que son muy ricas en aminoácidos cargados positivamente esto esta carga electrostática positiva que tienen eh
las siston permiten establecer una afinidad electrostática con el ADN que está cargado negativamente importante y entonces el número de cargas positivas netas que tengan las siston será un factor regulable dentro de las células que permita aumentar o disminuir esta interacción intermolecular entre el ADN y las histonas Otro aspecto que me gustaría señalar es que como pueden notar en este esquema los extremos aminoterminal de cada una de las proteínas histonas protruyen por fuera de los nucleosomas e incluso permiten el contacto de los nucleosomas adyacentes entre sí este aspecto a considerar es importante porque estos extremos n
terminales de las siston son sujetos de distintas modificaciones químicas covalentes que van a terminar impactando en la interacción de los nucleosomas entre sí y en la interacción entre las siston con el ADN que se enrolla alrededor de ellas estas modificaciones que aquí están representadas de manera esquemática en donde los extremos n terminales de la siona se representan con el código de aminoácidos de una única letra nos permiten ver distintas modificaciones covalentes a las que estos extremos están sujetos y usualmente tenemos tres modificaciones prominentes las acetilacion el agregado de un grupo acetilo las metilacion el agregado
de un grupo metilo o las fosforilaciones que implica en el agregado de un grupo fosfato en general estas modificaciones ocurren fundamentalmente en los residuos de licina indicados por la letra k en el código de aminoácidos de una letra recordemos que los residuos de lisina son uno de los aminoácidos que están cargados positivamente al pH celular aquellas modificaciones que están mejor caracterizadas en términos de su impacto funcional sobre la cromatina son las acetilacion y las metilacion y son sobre estas modificaciones sobre las que profundizaremos un poco más en este esquema estamos observando un residuo de aminoácido
de licina que puede estar conformando eh uno de los aminoácidos en los extremos n terminales de las histonas lo que estamos representando en este esquema Entonces es en la línea horizontal los enlaces peptídicos que conectaría a esta licina con otros aminoácidos y lo que se observa aquí es el resto r que protruye del aminoácido de licina como ustedes pueden observar aquí es característico del aminoácido de licina poseer un grupo amino en este resto r que efectivamente está cargado positivamente y le confiere a la licina esta carga positiva neta al pH celular un primer aspecto a
considerar es que cuando esta licina se acetila se le agrega Un grupo acetilo se pierde la carga positiva neta de este grupo aminoterminal es decir que la acetilación tiene como correlato la pérdida de una carga positiva neta de una vicina de las siston y Por ende esto disminuirá la tracción electrostática con el ADN cargado negativamente En otras palabras la acetilación tendrá como efecto la disminución de la fuerza de la tracción entre las histonas y el ADN por otro lado consideremos que si esta licina es sujeto de otra modificación covalente diferente en este caso la metilación
la metilación no modifica la carga positiva que tenía la histona originalmente es decir que la metilación por si misma no modifica la interacción electrostática entre el ADN y las histonas pero un punto central a considerar es que cuando las histonas se metilanilina una metilación simple doble o triple ya no puede ser sustrato de una acetilación es decir que la metilación tiene el efecto de bloquear el estado de la licina con su carga positiva y Por ende es frecuente observar en las lisinas que están metiladas una marca de cromatina cerrada es decir que tiene una alta
afinidad con las moléculas de ADN en resumen la acetilación remueve una carga positiva de las histonas disminuyendo su afinidad electrostática con el ADN en tanto que la metilación y la acetilación son reacciones mutuamente excluyentes Este primer mecanismo molecular que estamos viendo y que permite Modificar el grado de compactación de la cromatina mediante la modificación covalente de las siston es un proceso Dinámico está ejecutado por enzimas que introducen estas modificaciones químicas sobre las lisinas de las histonas pero también hay un segundo conjunto de enzimas que son capaces de remover estas modificaciones así por ejemplo la acetilación
de las lisinas está mediado por enzimas asil transferasas de histonas en tanto que su desacetilación por enzimas desacetilasas dionas la metilación está llevada a cabo por las metilasas dionas y las desmetilasa de histonas conducen a la remoción de los residuos metilos sobre las histonas esta dinámica de acetilación y desacetilación metilación y desmetilación es lo que permite que en distintos momentos de la vida de la célula sean distintos los sectores de la cromatina que estén poseyendo estas modificaciones en un momento dado un segundo mecanismo molecular que permita regular el grado de compactación de la cromatina está
debido a los complejos remodeladores de la cromatina estas Son estructuras compuestas por subunidades proteicas que utilizan la energía liberada por la hidrólisis del ATP para catalizar modificaciones en la posición o en la modificación de los nucleosomas por ejemplo mediante la acción de estos complejos remodeladores de la cromatina los nucleosomas que están en un determinado sector del genoma pueden desplazarse a sectores adyacentes permitiendo que ciertos segmentos del genoma se vuelvan accesibles a la maquinaria transcripcional otro efecto que pueden tener los complejos remodeladores de la cromatina es la de directamente eliminar a las subunidades de histonas de
un segmento del genoma despejando así eh su grado de compactación y permitiendo su su accesibilidad inmediata por último también los complejos remodeladores de la cromatina pueden intercambiar distintos tipos de histonas que componen a los nucleosomas por algunas variantes especiales de las histonas que tienen una afinidad diferencial con el ADN el último de los mecanismos moleculares que regulan la compactación de la cromatina es la metilación del ADN en este caso el agregado covalente de un grupo metilo no se da sobre la estructura de las cistas las proteínas que sobre las cuales se enrolla el ADN sino
que en este caso la modificación se da sobre directamente sobre la molécula de ADN esta metilación ocurre en residuos específicos ocurre sobre citosinas que están directamente adyacentes a nucleótidos de guanina HM y notemos que frecuentemente esta combinación de dinucleótidas en los eucariotas está frecuentemente concentradas en las regiones del promotor que Son regiones especiales que se encuentran cercanas al punto de inicio de un gen y son los sitios que como veremos más adelante en donde se asienta la molécula de ARN polimerasa 2 para iniciar la transcripción cuando estas nucleótidos de citosina eh se encuentran metilados la
metilación tiene por efecto un silenciamiento de los genes ya que ocurren dos efectos como consecuencia de esta metilación por un lado las citosinas metiladas no permiten el asentamiento de la rn polimerasa 2 en esa región de el genoma es decir al estar localizadas en un promotor estas eh metilacion de citocinas impiden el asentamiento de la maquinaria transcripcional y un segundo efecto que tienen es que reclutan a ese sitio enzimas que a su vez van a modificar a las histonas con un sentido de compactación por ejemplo reclutan a desacetilasas de histonas y a metilasas de histonas
que agregarán a ese sitio particular a las histonas que estén en las cercanías de estas regiones marcas de silenciamiento génico la metilación del ADN es una de las modificaciones que regulan la compactación de la cromatina que una célula puede transmitir a sus células hijas es decir que esta regulación que permitirá que ciertas zonas del genoma se encuentren más compactadas que otras y Por ende los genes que están en esa región no se expresarán puede ser transmitida durante eh la división mitótica y el mecanismo molecular que subace a esta transmisión se da por ejemplo por el
hecho de que los patrones de metilación del ADN son transmitidos a las cebras recién sintetizadas luego de la replicación del ADN por enzimas metiltransferasa de mantenimiento en conjunto estos tres mecanismos que hemos analizado las modificaciones covalentes de histonas la actividad de los complejos remodeladores de la cromatina y la metilación del ADN que en su conjunto regulan el grado de compactación de la cromatina y Por ende la accesibilidad de la maquinaria de transcripción eh al ADN son ejemplos de regulaciones que denominamos como epigenéticas este nombre deriva del hecho de que estas modificaciones no afectan la secuencia
de nucleótidos del ADN sino eh la accesibilidad de La Maquinaria transcripcional me gustaría mencionar que este término epigenética tiene un significado levemente distinto en el contexto de la biología molecular tal como lo estamos utilizando aquí que como se utiliza en biología del desarrollo en el contexto de la embriología en donde tienen un significado mucho más amplio y otras regulaciones ambientales que influyen sobre lo genético en ese otro campo de conocimiento se utiliza Este término en resumen podemos decir respecto de los mecanismos moleculares que regulan la compactación de la cromatina que la cromatina laxa la cromatina
transcripcionalmente activa se caracteriza Entonces por poseer histonas acetiladas no metiladas por que han actuado sobre ellas complejos remodeladores de la cromatina que han desplazado o removido algunos nucleosomas favoreciendo esta accesibilidad y que las citosinas del ADN no se encuentran metiladas esto contrasta con lo que vemos en el sector inferior de esta diapositiva la cromatina cerrada se caracteriza por que sus histonas están desacetilasas un ejemplo una enzima atilas de histonas actuando sobre este sector de la cromatina porque sus histonas también están metiladas recordemos que la metilación evita bloquea a las cistas en ese estado e impide
que sean acetiladas y esta y porque las citosinas de la ADN se encuentran metiladas podemos entonces relacionar lo que hemos visto hasta ahora con el primero de los ejemplos que vimos Al comenzar esta clase para entender Entonces como la expresión génica diferencial entre células que tienen el mismo genoma conduce a diferentes especializaciones celulares podríamos pensar que el genoma de la neurona y el genoma del hepatocito contienen regiones diferencialmente compactadas en su cromatina es decir aquellas regiones de la cromatina de la neurona que están compactadas y que están laxas son diferentes de las regiones que se
encuentran en estos estados en el hepatocito esto permitiría que de manera diferencial en esos genomas acceda a la maquinaria transcripcional y que Por ende sean distintos los subconjuntos de genes que se expresen en cada caso otro elemento que podríamos sumar a este ejemplo es que esa compactación y relajación local de la cromatina estaría mediada en parte por los mecanismos epigen que vimos recién la modificación covalente de histonas la metilación del ADN y la acción de los complejos remodeladores de la cromatina una pregunta que podemos dejar para más adelante dentro de esta misma clase es Cuáles
son los mecanismos que hace que ciertas regiones diferenciales en la neurona y en el hepatocito sean las que se compacten o se relajen es decir qué es lo que recluta a ciertos subsectores específicos del genoma a los modificadores epigenéticos que tendrán este efecto de compactar o relajar localmente la cromatina Vamos a continuar ahora en la segunda parte de esta clase analizando La regulación de la transcripción tengamos en cuenta que por más que la cromatina se encuentre laxa en una región particular del genoma es esto no implica que necesariamente la transcripción vaya a producirse En otras
palabras el hecho de que la cromatina est laxa permite la accesibilidad de la maquinaria de la transcripción pero la actividad de esa maquinaria es decir el inicio efectivo de la transcripción depende de mecanismos regulatorios adicionales que son los que analizaremos en este segmento de la clase para ello concentrémonos en la enzima central del proceso de transcripción y en algunas de sus características la enzima encargada de generar de polimerizar ribonucleótidos para generar una molécula de ARN el transcripto primario utilizando como molde una de las hebras de ADN de un gen particular es la ARN polimerasa en
humanos y en otros eucariotas existen distintas clases de arns polimerasas y la ARN polimerasa 2 es aquella en encargada de transcribir los genes que codifican proteínas por un lado hay que mencionar que está compuesta de distintas subunidades proteicas una de estas subunidades la subunidad un presenta un extremo elongado que se denomina extremo ctd por sus siglas en inglés carboxy terminal domain y este segmento este extremo carbox terminal cumple un rol regulatorio esencial porque como veremos en breve cuando la rn polimerasa se ubica al inicio de un gen para comenzar a transcribirlo en una región que
denominamos promotor permanece inactiva hasta que mediante ciertos mecanismos que veremos en breve se produce una fosforilación extensiva de los residuos de serina colocados en el extremo carboxiterminal Solo cuando se produce esta hiperfosforilacion activa y es donde efectivamente la transcripción progresa me gustaría subrayar Además que si bien a veces mencionamos en singular a la rn polimerasa 2 nos estamos refiriendo a una clase de moléculas es decir dentro de la célula no existe un único complejo de RN polimerasa 2 sino que tenemos que imaginar que en cada célula hay varios miles de arnes polimerasas dos transcribiendo activamente
distintos genes del genoma o algunas despegadas del ADN en el núcleo habíamos anticipado entonces que para que la ARN polimerasa acceda a una región promotora es decir A un segmento de ADN que se encuentre en el comienzo del inicio de la transcripción de los genes la cromatina tiene que estar en un estado relajado pero se necesitan otras condiciones moleculares para que la rn polimerasa 2 representada en este esquema por este esta figura Celeste para que pueda la rn polimerasa unirse al promotor reconocer a un promotor en términos moleculares tienen que existir sobre ese promotor el
reclutamiento de otras proteínas adicionales estas proteínas que pueden reconocer al promotor y que permiten a su vez el reclutamiento de la rn polimerasa en el promotor son los denominados factores basales de la transcripción H solo su Unión previa permite el reclutamiento de la rn polimerasa a un promotor particular es importante también notar que se requerirán regulaciones adicionales como habíamos anticipado para que la rn polimerasa entre en su estado activo mediante la fosforilación de su dominio carboxiterminal analicemos en este esquema algunas otras secuencias y proteínas que van a permitir esta este pasaje de la configuración en
activa de la rn polimerasa 2 a su configuración activa vemos en este esquema a la rn polimerasa 2 posicionada en una región promotora los promotores como anticipamos son segmentos del ADN que se encuentran en regiones cercanas al inicio de la transcripción y que se encuentran enriquecidos en un determinado número de secuencias una muy caracterizada es la secuencia denominada caj tata por la abundancia de timinas y adenosinas en esa región pero no es la única secuencia y se han encontrado otras secuencias características de otros promotores Aquí vemos entonces además de el promotor la ADN polimerasa posicionada
en él y el Gen en cuestión vemos Que río abajo es decir en secuencias posteriores a la región génica y en secuencias anteriores hay segmentos de ADN que van a cumplir funciones regulatorias del inicio de la transcripción de este Gen una característica entonces de estas regiones regulatorias es que pueden estar distantes en varios miles de pares de bases del inicio del nucleótido que marca el inicio de la transcripción de ese Gen y analizaremos en breve las funciones de estas regiones regulatorias Y cómo ejercen su efecto en el sitio del inicio de la transcripción esta secuencias
regulatorias han sido clasificadas clásicamente según el efecto que tienen sobre el inicio de la transcripción de un gen en cuestión Por ejemplo para un gen en particular Existen algunas secuencias denin adas potenciadores o enhancers que tienen el efecto de aumentar la frecuencia del inicio de la transcripción y otras secuencias denominadas silenciador o silencers que tienen el efecto contrario disminuyen la probabilidad de que la ARN polimerasa pase de su configuración inactiva a activa para que estas regiones regulatorias ejerzan su efecto sobre el inicio de la transcripción es necesario que se se unan a ella otras proteínas
con capacidad de Unión al ADN estos otros factores necesarios para que estas secuencias ejerzan su efecto se denominan factores de transcripción específicos y a diferencia de los factores de transcripción basales que son siempre cinco proteínas conservadas para todos los genes y todas las células eh de nuestro organismo los factores específicos de la transcripción son variables de Gen a Gen y esto confiere cierta especificidad respecto de El Efecto que ellos puedan producir una pregunta que nos podemos hacer es cómo es posible que los potenciadores y silenciadores con sus proteínas asociadas los factores específicos de transcripción puedan
tener un efecto a distancia en cientos o miles de pares de bases del inicio de la transcripción esto eh pudo ser elucidado hace ya más de 30 años sabiendo que si bien estas regiones se encuentran distantes en miles de pares de bases del inicio de la transcripción dentro de la célula la molécula de ADN es capaz de plegarse poniendo en proximidad a la región del inicio de la transcripción con las secuencias regulatorias unidas a los factores de inicio de la transcripción se introducen aquí otros elementos que participan de este fenómeno de la formación de este
gran complejo del inicio de la transcripción en esta imagen podemos ver que Unidos a los factores específicos de la transcripción que son estas proteínas que se unen directamente al ADN a las regiones regulatorias hay otras proteínas que se unen a ellos estas proteínas que se unen a los factores específicos se denominan corregulación serán coactivador y si se unen a factores específicos de la transcripción Unidos a silenciadores serán cilencio corre presores también llamados en conjunto todas estas moléculas a su vez interactúan con un gran complejo proteico aquí representado en Violeta que es la proteína mediadora este
complejo mediador este complejo multiproteico transduce las señales moleculares de los factores específicos de la transcripción y de los corregulación en la ARN polimerasa do y en los factores de transcripción basales permitiendo que uno de ellos fosforil extensivamente si están las señales potenciadoras correctas fosforil extensivamente la El dominio carboxiterminal y permita Entonces sí el inicio de la transcripción me gustaría hacer entonces un comentario adicional respecto de la función de los factores específicos de la transcripción no solo vimos que participan de la formación de este complejo eh del inicio de la transcripción transmitiendo señales regulatorias mediante el
complejo mediador Que regularán el inicio de la transcripción sino que también tienen una función adicional cuando un factor de específico de la transcripción se une a un sitio regulatorio potenciador o silenciador puede también reclutar a otras proteínas a ese sitio del genoma por ejemplo podría reclutar a ese lugar del genoma a una enzima modificadora de histonas Tal como vimos en la primera parte de la clase que podría por ejemplo acetil a las siston de esa región de la cromatina permitiendo la descondensación local y así la accesibilidad de La Maquinaria transcripcional también podría reclutar a complejos
remodeladores de la cromatina que eliminen transitoriamente los nucleosomas de una región exponiendo el promotor y permitiendo el asentamiento de los factores basales de la transcripción y de la rn polimerasa 2 de este modo los factores específicos de la transcripción permiten localizar en regiones específicas del genoma a los modificadores epigenéticos que vimos durante la primera parte de la clase por último me gustaría subrayar que los factores específicos de la transcripción que regulan en su conjunto Cuáles serán los genes que van a ser expresados en una célula ya sea porque determinan Cuáles son los complejos de inicio
de la transcripción que podrán formarse y porque reclutan a distintas regiones del genoma a los remodeladores epigenéticos pueden estar presentes en una célula pero no necesariamente estar activos a veces Estos factores específicos de la transcripción cuando están presentes se encuentran en un estado inactivo y es necesario que señales extracelulares induzcan una cadena de señalización intracelular que los transforme en productos activos Por ejemplo si ahora pensamos en el segundo ejemplo que vimos en esta clase como la señalización de la hormona prolactina inducía un cambio en la expresión génica de las células secretoras de la glándula mamaria
uno podría pensar que la prolactina induce una cascada de señalización que podría inducir la fosfor de un factor específico de la transcripción que solo en el estado fosforilado puede ahora migrar hacia al núcleo y formar parte de un complejo del inicio de la transcripción que permita el ingreso la transcripción de los genes específicos que se activan como respuesta a la señalización de la prolactina en resumen me gustaría hacer algunas reflexiones sobre los princip conceptos que analizamos en la clase de hoy en primer lugar vimos que las modificaciones epigenéticas regulan el grado de la compactación de
la cromatina y determinan entonces la accesibilidad o no de la maquinaria transcripcional y que estas modificaciones epigenéticas son modificaciones covalentes de histonas la actividad de los complejos remodeladores de la cromatina y la metilación del ADN también vimos que los factores específicos de la transcripción pueden reclutar a estos modificaciones a modificadores epigenéticos a las enzimas encargadas de hacer estas modificaciones epigenéticas en sitios específicos del genoma explicando Entonces por qué en distintos tipos celulares en donde va a variar el repertorio de factores específicos de la transcripción que existan existirán distintas subregiones del genoma que estén específicamente condensadas
o relajadas y además vimos que un segundo rol que tienen los factores específicos de la transcripción es no solo reclutar a los modificadores epigenéticos sino transducir señales a través del complejo mediador hacia la rn polimerasa y que solo una combinatoria particular de Estos factores específicos de la transcripción permitirán inducir esta transformación esta fosforilación del dominio ctd de la rn a polimerasa 2 y permitir el comienzo efectivo de la transcripción con esto terminamos la clase de hoy an