Olá eu sou Agnes Marissa Figueiredo e vamos iniciar a aula regulação gênica em nível de cromatina e splicing e sinalização a regulação de gens em eucarioto É um mecanismo extremamente complexo e ela pode ocorrer em diferentes níveis a níveis de cromatina a níveis de da própria transcrição do início da transcrição a nível eh do splicing a nível eh da passagem do DNA do núcleo para o citoplasma durante o processo de tradução ou seja ela pode ocorrer como eu falei nos diferentes processos da informação entretanto eh a mais importante fase né da regulação gênica é na
transcrição durante o processo em si da eh síntese do novo RNA pela RNA polimerase Então esse é um é a principal controle né da expressão gênica em eucariotos e qualquer falha que possa ocorrer na regulação gênica pode ser Fatal né pode significar doenças né E pode ser Fatal dentre os tópicos que nós nó escolhemos abordar sobre regulação gênica nós vamos comentar sobre a regulação em nível de cromatina vamos falar sobre as proteínas repressoras e também ativadoras da transcrição regulação em nível de splicing e regulação a nível de sinalização nós humanos possuímos cerca de 5 bilhões
é de palhas de base de DNA dentro de um núcleo de aproximadamente 5 micrm apenas Então esse DNA precisa estar compactado né sobre a forma de cromatina bom no nosso núcleo nós temos regiões de eucromatina e de heterocromatina de acordo com técnicas de coloração microscópicas Então essas regiões de eucromatina seriam regiões em que os nossos cromossomos se encontram menos denso né a cromatina não está tão enovelada enquanto que essas regiões mais escuras seriam regiões onde osos nossos cromossomos se encontram-se mais densamente compactados né Essa cromatina se encontra muito mais enovelada estudos con informacionais de alta
performance tem mostrado que o cromossomo pode ser dividido em duas classes uma região eh conhecido como domínios topologicamente Associados tades e compartimentos A e B tades são ricos em proteínas ctcs e coesas as coesas são proteínas da família svc que também auxiliam na formação do da cromatina né e auxiliando nesse novelo do cromossomo já o compartimento B é rico em proteínas com domínios eh associado à laminina lades no compartimento B Nós também eh também Foi verificado que ele é que ele é rico em ston H3 metilada na lisina 9 no resíduo e9 H3 K9 os
tades são estruturas dinâmicas ou seja podem ser moduladas uma vez que nos tads justamente se encontram as regiões gênicas né com seus promotores e regiões reguladoras também pode haver alguma plasticidade alguma dinâmica no compartimentos a Não tanto quanto em tades acredita-se que essa dinâmica pode ocorrer pela presença de enhancers que estão mais afastados do cor Genoma que poderiam estar local então em compartimentos AB o modelo de condensação da cromatina propõe que a medida que a transcrição cessa na metáfase a top isomerase 2 e as condensinas vão atuar para promover a compactação do DNA em domínios
condensados e positivamente rolados que forma então a estrutura do cromossomo mitótico quando na ausência da estona H1 quando a estona H1 é liberada essas Loops ess essas voltas do cromossomo são mais curtas né formando então fibras de tamanhos reduzidos e um cromossomo eh individualizado mais longo né E também mais individualizado quando nós temos a a presença da estona H1 nessa estrutura essas Loops elas são mais longas aumenta a largura das fibras e os cromossomos são menos individualizados e são mais curtos as histonas de eucarioto elas formam oct com duas cópias né de cada estona para
formar Então os nucleossomos né com o DNA eh dando mais ou menos duas voltas e meia ao redor desses nucleossomos eh em eucarioto o supercoiling ele é formado pelas polimerases seja DNA polimerase ou RNA polimerase no caso aqui nós estamos falando da RNA polimerase 2 né que é RNA polimerase que faz a transcrição da maioria dos RNA Mensageiros de eucariotos eh as topsom erases elas vão relaxar o supercoiling fazendo um corte em uma única fita um corte transitório em uma única fita ou em duas fitas né no caso de uma única fita quem faz esse
corte é a topo um e no corte de de duas fitas é a topo do na transcrição a região upstream a polimerase ela é supercoiling negativa então está mais enovelada né isso acontece devido Justamente a à ação da RNA polimerase 2 enquanto que a região downstream a RNA polimerase né a a região que D vai ser transcrita né ela tem supercooling positivo então como eu falei o supercoiling ele é gerado quando eh a RNA polimerase começa a atuar na transcrição né E ela vai desenrolando a fita para que a transcrição possa ocorrer né e na
parte upstream a fita vai ficando mais inovel o supercoil tem um papel fundamental na transcrição né a quebra das pontes de hidrogênio né que vai ser feito pela ação da polimerase 2 leva a formação do supercoil Positivo downstream ao processo da transcrição isso culmina com a remoção de núcleos somos no entanto esse supercoiling negativo up a RNA polimerase pode favorecer a formação de nucleossomos né nessa região aqui como a gente tá vendo e com isso a ligação dos fatores de transcrição porque vai estabilizar essa região a cromatina ela não é esttica ela pode sofrer modificações
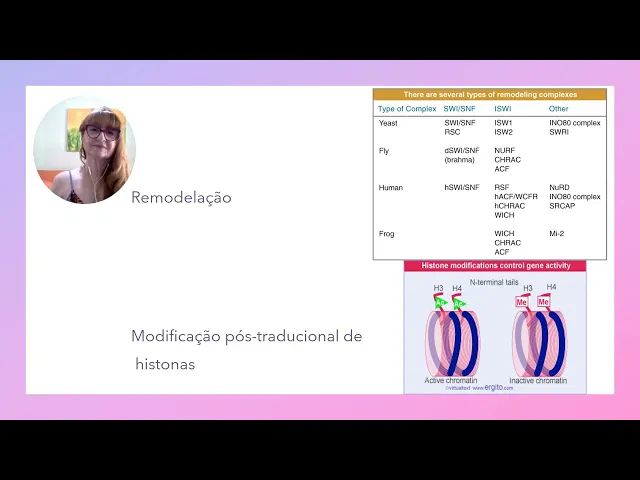
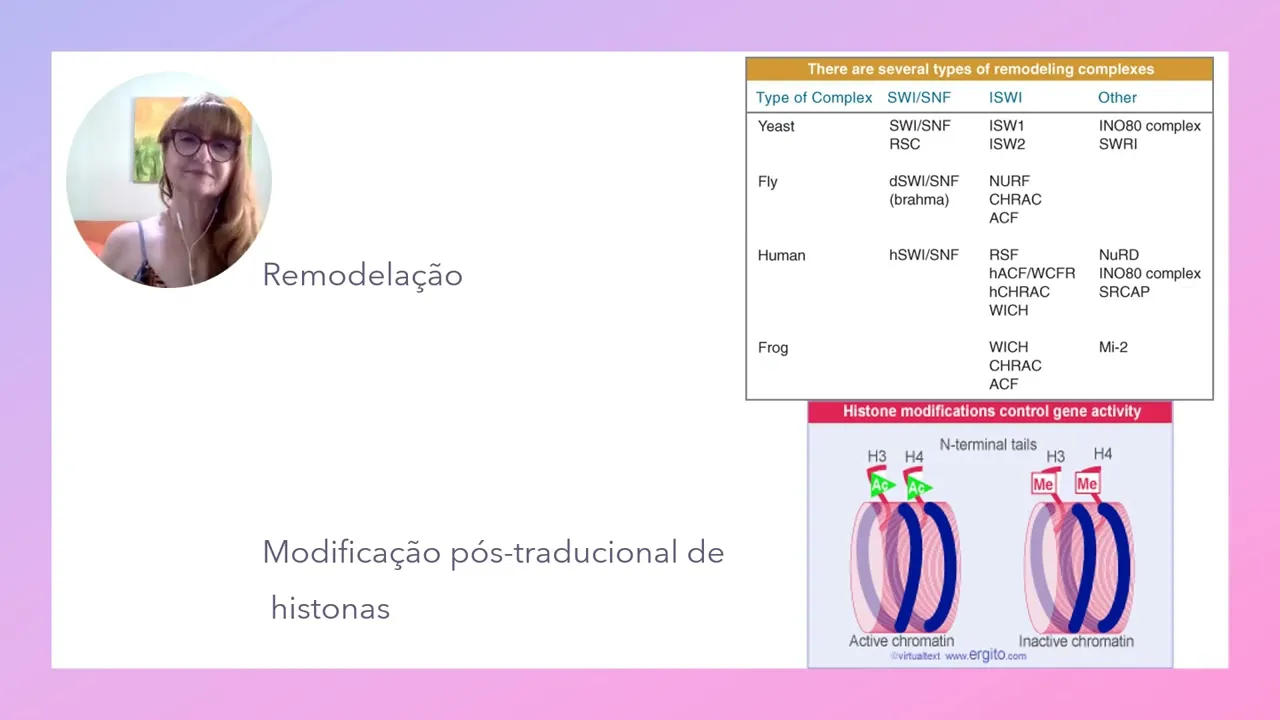
como por exemplo modificações na dinâmica da da arquitetura da cromatina né que a gente chama de remodelação para que os fatores de transcrição possam ter acesso ao gen né ao cor promoter aos elementos reguladores Como por exemplo o enhancer né E essa modificação Essa remodelação ela é feita por complexos proteicos dependentes de ATP que utilizam a energia do ATP para reestruturar os nucleossomos por exemplo eh reposicionando nucleossomos nesse eh que é comumente chamado de deslizamento de nucleossomos ao longo do DNA podem eh fazer com que haja eh remoção ou adição de estona principalmente da estona
H1 né então existe aí um mecanismo de on off para estona H1 ela pode estar ou não presente né na formação do núcleos somo e todas essas modificações elas são feitas para que eh o gen ele pode ser eh mais ficar um pouco mais relaxado né esse esse núcleo essa região gênica ficar um pouco mais relaxada para que os fatores de transcrição possam ter acesso existe um outro tipo de modificação que nós chamamos de modificação pós traducional das eston e eu trouxe aqui dois exemplos de acetilação e de metilação e as estas elas TM carga
positiva né e o DNA tem carga negativa então há uma atração né Eh entre estona e os o DNA né entre os núcleos somos e o DNA daí esses enrolamentos do DNA Em volta dos nucleossomos entretanto quando ocorre a acetilação ou metilação essa carga da da estona ela é neutral ada E com isso o DNA vai ficar mais frouxo né uma vez que essa o DNA é negativo quando a estona tá positiva né fortemente positiva esse novelo é muito é muito denso né É muito grande no entanto quando você tem acetilação metilação você tem uma
neutralização dessa carga da estona E com isso esse DNA vai ficar mais frouxo eh em relação a as proteínas né o complexo prote que fazem a remodelação nós trouxemos aqui alguns exemplos são vários né complexos que podem fazer essa essa remodelação né Eh dentre eles o swi snf mas existe também outros né como iswi e outros complexos aqui em humanos né a cromatina é uma estrutura está mas apresenta alguma plasticidade quando nós temos na região gênica é a formação de núcleos somos né esse novelo do DNA a transcrição ela está inativa porque a RNA polimerase
e os fatores de transcrição não vão ter acesso ao Core promoter entretanto pode haver modificações nessa cromatina de forma que a RNA polimerase ten acesso a região promotora né do Core promoter assim como os fatores Gerais de transcrição e os nucleossomos não vão ter os octâmeros distoma não vão ter acesso a essa região para formar então nucleossomos então com isso a transcrição está ativa né Nós vimos que complexos eh proteicos podem levar uma remodelação dessa cromatina né complexos que T domínio at atpase que vão fazer essa eh remoção de octâmeros ou deslocamento de de deslizamento
de octâmeros né Eh a partir da energia da quebra da Hidrólise do ATP né Nós vimos isso anteriormente mas nós vimos também que existem outras modificações né na que pode ocorrer nos nucleossomos como as modificações eh tradu I ais levando por exemplo a acetilação aqui é o exemplo de acetilação e na realidade aqui é desacetilação e aqui é acetilação nós vimos que a acetilação de resíduos né da de calda de estona né resíduos de serina na calda de estona principalmente serina eh leva a uma acetilação desses resíduos E com isso há uma neutralização da carga
positiva da estona E com isso há uma [Música] eh um relaxamento né dessa região né com uma uma uma Eh afrouxamento vamos dizer assim um relaxamento da fita de DNA e com isso a RNA polimerase e os fatores de transcrição vão ter acesso a região promotora né então como eu falei para vocês essas eh acetil que atuam acetil as proteínas né a a estona eh São complexos multiproteicos da mesma forma são complexos multiproteicos as desacetilases as desacetilases elas vão destilar a estona nas caudas de estona E com isso vai haver um maior enovelamento desse eh
DNA né E nesse caso vai haver repressão da transcrição então a desacetilação né ela acaba levando a uma repressão da transcrição né então se predomina desacetilação a transcrição vai ser inibida né porque eh os fatores Gerais de transcrição não vão ter acesso ao à região do cor promoter ao contrário quando ocorre acetilação há uma neutralização dessa carga positiva da estona E com isso o DNA vai desenrolar mais ele vai ficar mais frouxamente ligada nessa cromatina as metilases estona elas atuam de um modo geral reprimindo a transcrição ao contrário das proteínas Rats né que são as
eh estas atilas que ativam a transcrição a acetil né os nucleossomos as lisinas de nucleossomos já as metilases elas vão metilar o as eston E com isso vai levar a uma repressão da transcrição da mesma forma que as rates né as metilases e as desmetilação eh desacetilases né a hd6 elas são proteínas multiméricas proteínas formadas de diferentes subunidades proteicas né diferentes domínios eh vão estar ali compondo todas essas proteínas que modificam estona né Eh esse complexo proteico então Eh como eu falei apresenta diferentes domínios por exemplo domínio de ligação ao DNA né domínio de liga
ação e a um fator de transcrição domínio e metilas ou atilas dependendo se é uma uma proteína eh que vai fazer acetilação ou metilação né mas como eu falei as metilases de um modo geral elas reprimem o gen no entanto certas metilases que apresentam o domínio 7 Elas têm como característica causar uma a trimetil lação do H3 K4 M3 que seria a trimetil do resíduo 4ro de lisina da estona H3 e essa trimetil parece ser importante para a acetilação de promotores para promover essa acetilação eh E isso acontece por exemplo é no gen Rox que
é um g eh de vertebrados né é um g por exemplo importante na diferenciação entre braço e perna eh e eh porém como eu falei a metilação de modo geral ela vai inibir a transcrição essa transcrição ela ela vai ser eh inibida tanto por recrutar inibidores da transcrição como por inibir a ligação dos fatores de transcrição os fatores de transcrição conhecidos como como Pioneiros eh Pioneer transcription factors eles podem interagir com as tonas exemplo é o Fox a e receptor de glicocorticoides o Fox a nas suas isoformas Fox A1 também conhecido como hnf 3 e
Fox A2 também conhecido como hnf 3B eles interferem com a estona H1 vocês lembram que H1 ela pode entrar e sair de núcleos somos o exemplo que eu dei foi o exemplo daquele cromossomo na interfase né o cromossomo na sua forma superior né com as eh individualizado né e eu mostrei para vocês que a estona H1 Ela poderia estar presente ou ausente e quando ela está presente esse cromossomo individualizado fica um pouco mais relaxado né e o Fox a1 e a2 eles apresentam domínios que são estruturalmente semelhantes às tonas E com isso esses reguladores eles
podem deslocar o H1 permitindo então o relaxamento dessa cromatina e o acesso a outros fatores de transcrição os receptores de glicocorticoides eh que são fatores de transcrição como vocês vão ver eles se ligam ao DNA através da ativação por hormônio então quando eh se liga o hormônio esses fatores de transcrição eles ficam ativados e vão se ligar ao DNA e eles se ligam principalmente an nucleossomos com isso eles levam ao recrutamento de um remodelador brg1 que é pertence à família swi snf e com isso vai haver uma depleção de nucleossomos na região promotora e ativação
dos eh do G né do gens ou dos gens por eles é por esse fator regulados geralmente a regulação de um gen ela acontece a nível eh de transcrição né da ativação da transcrição com os fatores Gerais de transcrição eh com a os eh enhancers né as proteínas de ligação aos enhancers eh e normalmente Então essa transcrição ela é regulada Logo no início ocorre ou não ocorre mas existe também os fatores eh repressores da transcrição não são só os ativadores né os ativadores eh como os fatores gerais e os fatores específicos da transcrição essa regulação
também se dá a nível de repressão e um repressor ele pode eh fazer essa repressão de várias maneiras né uma delas é o repressor se ligar no sítio de ativação ou próximo ao sítio de de ativação por exemplo pode se ligar no enhancer impedindo que o ativador que seria um fator específico da transcrição se ligasse nessa região no seu enhancer e com isso então a transcrição seria inibida uma outra forma seria o repressor ter um sítio de ligação pró prximo ao enhancer né ao sítio onde se liga uma proteína ativadora e a região ativadora desse
eh ativador né dessa proteína que se liga o enher ser bloqueado essa região ativadora ser bloqueada pelo repressor então o repressor tem um domínio que vai reprimir o domínio ativador do fator específico de transcrição se ligando em um sítio próximo ao sítio e do enhancer correspondente àquele ativador uma outra forma seria o repressor se ligar ao TF 2D no na região do cor promoter impedindo que o ativador possa fazer contato com essa região então por exemplo Eh vamos supor que esse determinado ativador se ligue a através de um fator Geral de transcrição mas o repressor
acaba se ligando a esse fator impedindo que o ativador se ligue então com isso também eu posso ter uma repressão da transcrição né a nível ali eh da ação né são repressores que vão impedir a ação dos ativadores de transcrição a regulação ela também ocorre eh muito dependente do estímulo né que essa célula vai receber né e a sinalização tem um papel importantíssimo na regulação da transcrição eu trouxe alguns exemplos para vocês de de sinalização e nós vamos iniciar com a regulação hormonal alguns hormônios eles e conseguem ultrapassar a membrana e cair no citoplasma né
entrar dentro da célula esses hormônios são hormônios lipofílicos né eles conseguem então interagir com essa membrana e penetrar na célula exemplo de hormônios que conseguem penetrar então na célula são eh os hormônios como estrogênio glicocorticoide dentre outros né esses hormônios eles possuem então Eh receptores nucleares hormonais que são receptores que uma vez ativados eles vão conseguir entrar no núcleo um exemplo então Eh como eu já falei para vocês são receptores de estrogênio de progesterona glicocorticoides receptores de hormônio tiroidiano receptor de ácido retinóico por exemplo né são então receptores que apresentam uma região variável aqui em
verde eles apresentam um domínio de ligação ao DNA representado aqui por essa cor laranja né amarelada e aqui em lilá um domínio de ligação ao hormônio então o domínio de ligação ao hormônio para cada regulador hormonal específico né pros reguladores de estrogênio por exemplo esse domínio aqui é um domínio conservado né então são domínios conservados o domínio variável é justamente esse domínio ativador né porque vai depender do Gen onde esse eh fator de transcrição vai atuar né então um regulador um receptor eh hormonal ele vai ter uma região variável que eu coloquei aqui em verde
o domínio de ligação ao DNA que normalmente é um domínio mais conservado e também é conservado o domínio de ligação ao hormônio eu trouxe aqui para vocês um esquema de regulação hormonal de um hormônio lipossolúvel que seria o glicocorticoide né Então nesse esquema nós podemos ver aqui em lilá amarelinho e verde o receptor de hormônio aqui seria a justamente o domínio de ligação ao horm aqui seria o domínio de ligação ao DNA e aqui o domínio ativador né normalmente na ausência do hormônio esse receptor ele está ligado a chaperonas hsp90 chaperonas São aquelas proteínas que
modificam a estrutura de outras proteínas né então na ausência do hormônio esse receptor nuclear está ligado no citosol hsp90 no entanto o hormônio quando presente nesse citosol ele vai se ligar na região ali de domínio né de ligação hormonal do receptor fazendo com que haja um deslocamento da hsp90 com isso esse receptor adqu uma forma ativada e consegue expor o seu sinal de importação nuclear e ele consegue então entrar no núcleo no núcleo ele vai se ligar a região promotora para fazer a ativação desse gen né ele vai se ligar através do seu domínio de
ligação Adna e a sua o seu domínio ativador vai ficar livre então para poder atuar né na transcrição gênica eu trouxe aqui um exemplo para vocês de moléculas sinalizadoras eh hormônios ou moléculas sinalizadoras que não conseguem interagir com a membrana Então não vai conseguir entrar na célula eh São os hormônios e moléculas sinalizadoras que são solúveis em Água exemplo insulina o glucagon e e o interferon aqui o exemplo é um esquema bem resumido né da sinalização do interferon então o interferon quando se liga oo seu receptor imediatamente ocorre uma dimerização desse receptor e ativação da
Jaque cinase que vai fosforilar o stat e a fosforilação do stat leva a uma dimerização desse regulador que vai então ter permissão para entrar no núcleo porque o seu sinal de importação nuclear fica exposto ativando então a resposta gênica aqui o Outro exemplo é da insulina então a insulina quando se liga aos seus receptores ela acaba levando a uma fosforilação do foxo um que é um regulador transcricional e essa esse sequestro desse regulador leva a uma diminuição da gliconeogênese ao contrário ocorre uma ativação do sreb PC srebp1 que vai ser degradado e essa forma ativada
desse regulador sreb p1c faz com que haja um aumento da Lip né então há um aumento da gliconeogênese ou melhor há uma diminuição da gliconeogênese Porque nós não temos o foxo um no núcleo ele vai est sequestrado ali no citoplasma devido a essa fosforilação ele não vai conseguir mais entrar no núcleo né Há uma diminuição do foxo no núcleo e o aumento da lipogênese não sei se ficou confuso que eu fiz aqui uma pequena troca né mas o que acontece é que quando há uma ativação do receptor da insulina pela presença da insulina ocorre então
um sequestro do Fox um desse regulador né que está aqui fosforilado então há uma diminuição da presença desse regulador no núcleo E com isso uma diminuição da gliconeogênese ao contrário aá uma ativação do srebp1 C que vai ser degradado essa degradação né Eh parcial vai levar a uma ativação desse fator E com isso o aumento da lipogênese uma outra sinalização hormonal né que ocorre eh com ativação do hormônio Sem passagem para venda célula né através da ligação com o receptor é o caso do glucagon eh e o o glucagon ele se liga a um receptor
tipo proteína G eh muito comum esse tipo de de receptor em Células eucarióticas E quando o glucagon se liga ao seu receptor proteína G ocorre um acoplamento das subunidades desse receptor e consequente ativação de adenilato ciclase a ativação da adenilciclase vai levar então a um aumento dop cíclico e Esse aumento de Amp cíclico sequestra subunidade R da n da eh fosfoquinase a E com isso a fosfoquinase a ela é ativada permitindo a transativa por cálcio do fator creb o cálcio ele geralmente está associado aos receptores de proteína G uma vez que a ativação desses receptores
leva formação de canais de cálcio que aqui não é mostrado mas eu vou mostrar para vocês no no slide posterior havendo acúmulo de cálcio no citoplasma da célula e saída de cálcio do núcleo para o citoplasma então e eh esse tipo de sinalização é um tipo de sinalização muito importante na célula eucariótica e eh ocorre na ativação de vários fatores de transcrição né Essa ativação envolvendo proteína G canais de cálcio aqui nesse slide Eu Tô mostrando para vocês então a ligação de um sinalizador né de um sinal ao receptor proteín G levando a uma série
de eventos como eu mostrei anteriormente a fosforilação e também formação de canal de cálcio né então a o acúmulo de cálcio no citoplasma ele pode ser muito importante na ativação de fatores específicos da transcrição Como por exemplo o nfat que é chamado fator nuclear de ativação de células T nos neurônios eh nós temos uma isoforma do Nefa que é o nfat C4 então nfat C qu ele está presente nos neurônios e ele tem um papel importante na plasticidade de sinapse mediadas por neurotrofinas né e uma dessas neurotrofinas um desses fatores neurotróficos é o bdnf então
o bdnf ao se ligar por exemplo a um receptor de proteína G vai levar formação de canal de cálcio com armazenamento acúmulo de cálcio dentro da célula esse acúmulo de de cálcio vai levar então à ativação de um fator de transcrição da família Nefa né Eh o o Nefa C4 E com isso eh ativado pelo cálcio Nefa C4 vai conseguir entrar no núcleo ele vai ter eh a permissão para entrar em núcleo e ativando então resposta gênica bom como eu falei a regulação gênica ocorre em todos os níveis né Inclusive a nível de splicing a
a regulação a nível de de splicing é muito importante na diferenciação celular e também eh pra manutenção da fisiologia de um determinado tecido né de suas características fisiológicas que são específicas em um tecido em relação ao outro eh aqui eh nós vemos então um exemplo de splicing alternativo para o gen e da fibronectina de fibroblastos e de fibronectina de hepatócito então notem que o RNA de fibronectina de fibroblasto ele possui a retiradas de entrons de forma diferente em relação ao RNA mensageiro da fibronectina de hepatócitos aqui notem que o exon 2B e 2 A estão
presentes no RNA mensageiro de fibronectina de fibroblasto no entanto para o RNA mensageiro de fibronectina de hepatos esses exons funcionam como como introns eles são removidos do RNA mensageiro da fibronectina de hepatócito durante o splicing então então é essas diferenças na retirada né Eh de introns né e ligação de exons de um gen para outro eh em um G num tecido vamos dizer assim e um gen em outro tecido né do mesmo gen em outro tecido é chamado splicing alternativo Então esse a esse mecanismo nós damos o nome de splicing alternativo tá na realidade o
gen os G são os mesmos exatamente igual a sequência gênica é exatamente igual Mas a forma como os introns serão retirados né nesses eh em tecidos eh diferentes também pode ser diferente vamos dar uma olhada no spli alternativo da tropomiosina aop Usina é uma proteína importante para a contração muscular ou para estabilizar microfilamentos celulares que são estruturas do nosso citoesqueleto obviamente como fazem parte eh do nosso cito esqueleto né Nós temos que ter diversos diversas isoformas de trop miosinas dependendo se essa tropomiosina vai estar presente na musculatura esquelética na musculatura Lisa no cérebro em células
do cérebro né em células eh como fibroblastos Então dependendo da célula nós vamos ter necessidade de uma isoforma de tropomiosina E essas isoformas são obtidas através de retiradas remoções né Eh diferent do Z inro como a gente pode ver exemplificado aqui nessa figura nesse esquema né Nós temos diferentes formas de retirada de introns diferente forma de splicing eu trouxe aqui para vocês um exemplo de splicing alternativo e inseto para que vocês possam entender melhor os mecanismos que podem estar por trás desse splicing a alternativo então Aqui nós temos o exemplo do gem S XL em
embrião feminino de inseto e embrião masculino Então esse gen no início da embriogênese ele tem dois promotores no início da embriogênese ele é transcrito pelo promotor early né promotor é de início e é essa transcrição leva aqui a produção né a a a um transcrito primário que contém o exon 1 e o exon 2 né o intro Então vai ser removido o exon 1 e o exon 2 vai ser ligado dando origem a proteína sxl precoce no entanto essa proteína ela só é transcrita no embrião feminino no embrião masculino essa proteína é ausente a transcrição
não ocorre no embrião masculino é interessante que numa fase mais tardia da embriogênese ocorre a transcrição do desse G SQL por esse promotor né o late promoter PL E aí nós temos aqui a o transcrito primário né contendo exons e introns né e os exons 1 2 3 e 4 sendo que a proteína precoce sxl que só está presente no embrião feminino ela se liga justamente naquela região do intron onde o u1 ou melhor O2 snrna se liga para formar aquele Brain Point dessa forma como essa proteína está aqui ela vai impedir a ligação do
2sn RNA e com isso o splicing aqui não vai ocorrer e sim vai ocorrer nessa região onde ela está livre pro dois se ligar então nós teremos uma proteína formada pelo exon 1 2is e o exon 4 porque o exxon 3 aqui vai ser removido como se fosse um intro e essa proteína ess XL tardia é uma proteína ativa no embrião feminino no entanto no embrião masculino ocorre a transcrição também tardia da proteína e ou melhor do do Gen sess XL sendo que como não houve a transcrição do sxl precoce né dando origem aquela proteína
que se liga ali naquela região Zinha do intron onde justamente o 2 snrna se liga então a retirada de íons vai ser de forma que o exon 2 vai se manter Então nós vamos ter o exon 1 2 3 e 4 e essa proteína que contém exo 1 2 3 e 4 é uma proteína não funcional então no embrião masculino a proteína tardia não é funcional e no embrião feminino a proteína tardia é funcional porque que houve a síntese da proteína precoce sxl que é uma proteína que se liga naquela região ali do que formaria
que O2 SN RNA formaria o Branch Point né com aquela adenina que fica com a com a hidroxila livre para fazer a primeira fosforilação e aqui isso não vai acontecer porque o um o dois né não vai poder se ligar aqui O2 se liga porque não tem a proteína precoce E com isso então nós temos o exon eh o RNA mensageiro formado pelo exon 1 2 3 e 4 que vai dar origem uma proteína não funcional no embrião masculino então vejam como o Splice alternativo pode ser importante na na diferenciação celular uma outra forma né
de regulação gênica aqui no caso para eh a formação de isoformas de proteína seria a edição do RNA eh existem vários tipos né de edição eu trouxe aqui para vocês um tipo que é a modificação de nucleotídeo específico no mrna intestinal da apolipoproteína B do Gen que codifica para apolipoproteína b então no intestino o RNA mensageiro para apolipoproteína B ele sofre uma desaminação da citidina né transformando então a citidina em uridina essa transformação é uma transformação química não é uma mutação porque ela ocorre já na fita do RNA depois que o RNA é é formado
né ocorre Então essa transformação química de uma citidina em uma uridina então Aqui nós temos o exemplo que eu citei né do Gen da apolipoproteína que no intestino Essa citidina é transformada em uridina através de uma desaminação né a saída desse nh2 é interessante que essa desaminação então essa essa transformação dessa citidina em uridina ocorre justamente aqui nesse codons caa que é o códon da glutamina no fígado nós temos uma proteína é maior né então o RNA mensageiro ele é maior do que em relação ao intestino no intestino a transformação da citidina e a uridina
cria um Stop codon o stop codon uaa E com isso essa proteína fica mais curta porque a transcrição Eh Ou melhor a tradução dessa proteína né Vai parar ali naquele Stop conon Então eu tenho uma isoforma de apolipoproteína no intestino menor do que a apolipoproteína no fígado então é o mesmo gem né mas esse RNA mensageiro sofre uma edição no intestino de forma que haja uma transformação química onde a citidina é transformada em uridina criando então um Stop codon o a e com isso a tradução da proteína Vai parar ali naquele Stop codon então a
prote a apolipoproteína ativa no intestino é menor do que a sua isoforma no fígado devido a esse processo de edição então como eu mostrei para vocês o Nós seres eucarióticos somos muito complexos e por isso a nossa regulação gênica tem que ocorrer de uma forma muito bem orquestrada muito fina em todos os níveis da informação né em todos os processos da informação desde a cromatina né a regulação dessa cromatina até a regulação dessa transcrição né a presença ou ausência de um fator específico de transcrição a presença de um repressor ou não a ativação desse fator
né como esse fator vai ser ativado eh através de seus receptores nucleares ou receptores do tipo proteína G que vão que vão estar expostos eh na superfície da célula eh Além disso nós temos a regulação através do splicing né a regulação a nível de splicing como que vai ocorrer esse splicing a regulação a nível de edição do RNA mensageiro que é uma modificação química que ocorre nas bases de nucleotídeo do RNA mensageiro né e não é uma mutação e nós temos também a regulação eh que envolve a passagem desse RNA através dos poros da membrana
nuclear que eu não cheguei até aí né Eh uma vez que não teríamos tempo de abordar todos os processos da regulação gênica então nós preferíamos ficar mais ligado aos processos relacionados à trans desse RNA mensageiro mas também existe regulação a nível pós traducional após a tradução essa proteína de eucarioto ela é frequentemente modificada né Por mecanismos de acetilação fosforilação né então todas essas etapas também vão ser reguladas né E vão ser importantes para o funciono dessas proteínas Então é por esse motivo né pelo fato de que nós não teríamos tempo de abordar todos os processos
da regulação E pelo fato da regulação da transcrição ser um processo extremamente importante e complexo Nós demos prioridade então a estudar as bases da regulação gênica mais ao nível de transcrição chegamos ao final dessa aula eu espero que vocês tenham gostado que eu ten tinha sido Clara o suficiente e agradeço vocês pela oportunidade muito obrigada