Hay algo que ocurre ahora mismo en tu cuerpo que resulta difícil de comprender en su totalidad. En este preciso instante, mientras respiras, mientras tu corazón late sin que tú se lo indiques, aproximadamente 25 billones de células están circulando por cada vaso sanguíneo, arteria [música] y capilar de tu organismo. No millones, billones.
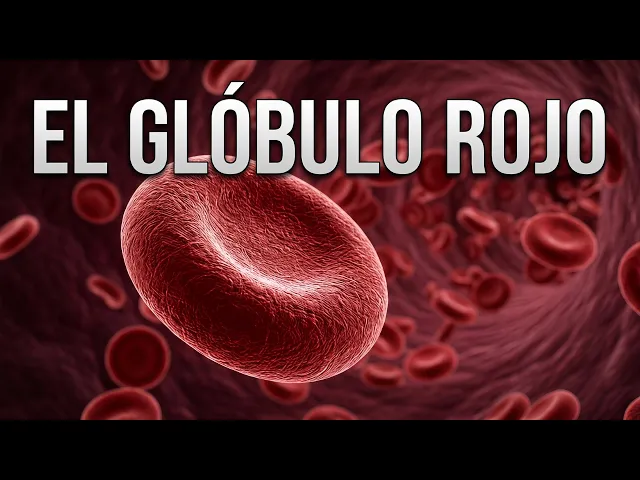
25 billones de estructuras microscópicas que no tienen núcleo, que no pueden dividirse, que no pueden producir nuevas proteínas para reparar el desgaste que sufren con el tiempo y que, sin embargo, sostienen cada función vital que te mantiene con vida. Se llaman eritrocitos. El mundo los conoce como glóbulos rojos y la mayoría de las personas los imagina como pequeñas bolitas de sangre que transportan oxígeno de un lugar a otro.
Esa imagen es correcta en su forma más superficial, pero oculta una arquitectura biológica tan precisa, tan elegante, tan sorprendentemente especializada, que cuando se examina en detalle cambia por completo la manera en que entendemos lo que significa estar vivo. La historia de los glóbulos rojos no empieza en el interior de un hospital ni en los libros de medicina moderna. Empieza en el siglo X cuando un científico neerlandés llamado John Swammerdam observó por primera vez a través de un microscopio rudimentario pequeñas partículas ovaladas flotando en la sangre de una rana.
Pocos años después, en 1674, Antony Van Lewen Hook perfeccionó esa observación y describió con asombro lo que veía en su propia sangre. unas partículas aplanadas de color rojo que se desplazaban con fluidez a través de los vasos. No entendía que hacían.
No podía imaginar su función, pero las veía y eso bastó para que la ciencia comenzara a hacerse las preguntas correctas. Durante más de dos siglos, los científicos debatieron la función de estas células. Se sabía que la sangre transportaba algo esencial para la vida.
Se sabía que los animales privados de sangre [música] morían rápidamente, pero el vínculo entre esas pequeñas partículas rojas y el oxígeno que respiramos no se estableció con claridad hasta bien entrado el siglo XIX, cuando la química comenzó a revelar los secretos de la hemoglobina. Ese descubrimiento, aparentemente simple, fue en realidad una revolución porque demostró que la vida no depende solo de órganos grandes y visibles, sino de estructuras [música] demasiado pequeñas para verlas a simple vista, diseñadas con una precisión que la evolución tardó cientos de millones de años en perfeccionar. Para entender qué hace tan especial a un glóbulo rojo, primero hay que entender lo que no es.
Un glóbulo rojo maduro en el cuerpo humano no tiene núcleo. Esta sola característica lo distingue de casi todas las demás células del organismo. La mayoría de las células del cuerpo humano llevan en su interior un núcleo que contiene el ADN, [música] el manual de instrucciones genéticas que permite a la célula producir proteínas, responder a señales, dividirse, repararse.
El glóbulo rojo maduro no tiene nada de eso. No tiene núcleo, no tiene mitocondrias, no tiene retículo endoplasmático. Cuando termina su proceso de maduración en la médula ósea, expulsa activamente su propio núcleo, como si se deshiciera de un equipaje innecesario.
Lo que queda es una estructura casi pura, [música] dedicada en su totalidad a una sola misión, transportar oxígeno. Esta decisión evolutiva tiene una lógica impecable. Al eliminar el núcleo y las organelas internas, el glóbulo rojo libera espacio y ese espacio lo ocupa hemoglobina.
Cada eritrocito contiene aproximadamente 270 millones de moléculas de hemoglobina. Cada molécula de hemoglobina puede transportar cuatro moléculas de oxígeno. Si multiplicamos esas cifras, obtenemos que un solo glóbulo rojo es capaz de cargar alrededor de 1000 millones de moléculas de oxígeno [música] en un único viaje desde los pulmones hasta los tejidos.
La ausencia de núcleo no es una imperfección ni una limitación. [música] Es una adaptación brillante que maximiza la capacidad de carga de la célula más abundante del cuerpo humano. Pero la anatomía del glóbulo rojo no termina en su contenido.
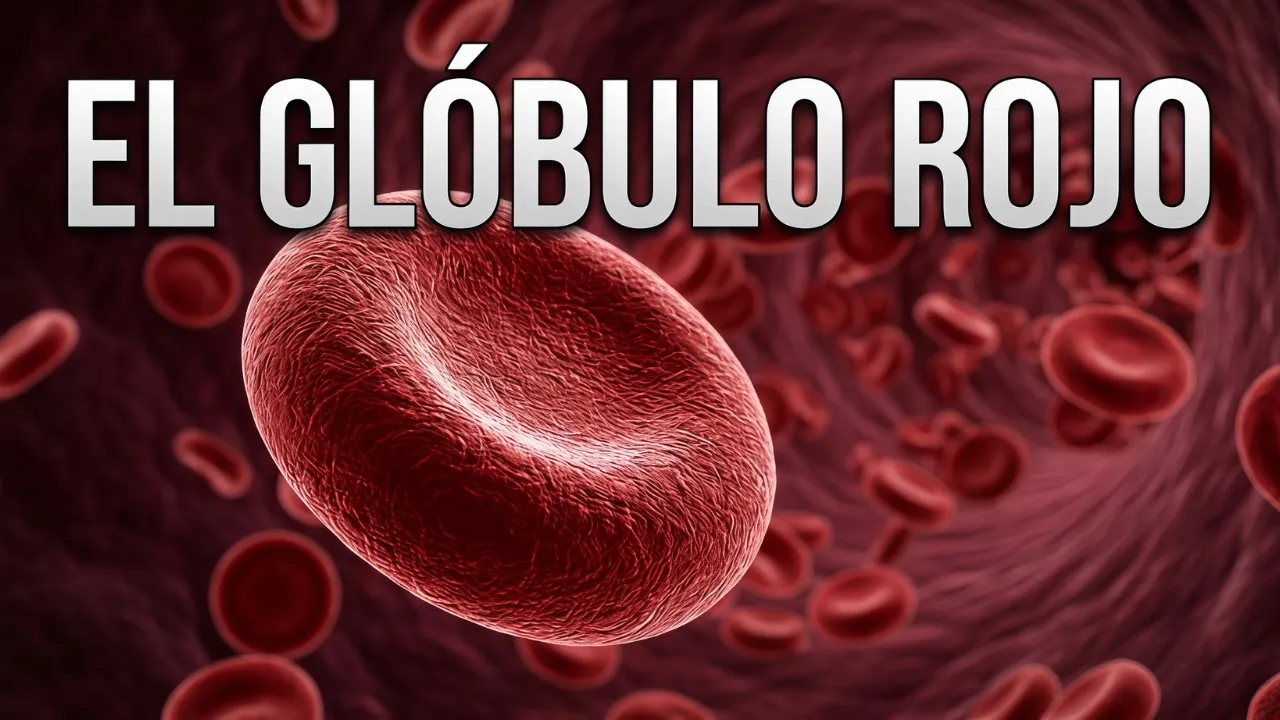
La forma del eritrocito [música] es igualmente reveladora. Bajo el microscopio, un glóbulo rojo sano presenta una morfología que los anatomistas describen como disco bicóncavo, un disco circular aplanado en el centro con los bordes ligeramente más gruesos. Tiene un diámetro de aproximadamente 6 a 8 micrm y un grosor de alrededor de 2 micrómetros [música] en los bordes y menos de 1 micrómetro en el centro.
Esta geometría, que parece surgida de un cálculo de ingeniería, tiene consecuencias profundas para su función. El disco [música] bicóncavo maximiza la relación entre superficie y volumen. Cuanto mayor es la superficie en proporción al volumen, más eficiente resulta el intercambio de gases entre la [música] célula y su entorno.
Al aplanarse en el centro, el glóbulo rojo expone más membrana al oxígeno y al dióxido de carbono, acelerando el proceso de carga y descarga en pulmones y tejidos. Pero hay algo más. Esta forma también confiere al eritrocito una flexibilidad extraordinaria.
Los capilares más pequeños del cuerpo humano tienen diámetros de apenas 3 a 5 micrómetros, más pequeños que el propio glóbulo rojo. Para atravesarlos, el eritrocito necesita deformarse, doblarse sobre sí mismo, adoptar formas alargadas o tortuosas que le permitan pasar por espacios que en principio parecen demasiado estrechos para su tamaño. Y lo hace.
entra en esos capilares, los recorre rozando las paredes y sale al otro lado con su forma original prácticamente intacta. Esta flexibilidad no es accidental, está codificada en la estructura de la membrana del glóbulo rojo. La membrana eritrocitaria es una bicapa lipídica como la de cualquier célula, pero lleva asociada una red de proteínas que funciona como un andamiaje elástico.
Las principales son la espectrina, la anquirina y la proteína banda 4,1. nombres que la biología celular ha ido desentrañando con paciencia durante décadas. Estas proteínas forman una malla que recorre la cara interna de la membrana anclada a ella por múltiples puntos de unión y que permite a la célula estirarse, comprimirse y recuperar su forma sin romperse.
Es en esencia un esqueleto flexible que hace posible lo que ninguna otra célula del organismo puede hacer con tanta facilidad. atravesar espacios imposibles y regresar intacta. En el centro de toda esta arquitectura está la hemoglobina, no como un componente más, sino como el elemento que define la identidad funcional del eritrocito.
La hemoglobina es una proteína compleja compuesta por cuatro subunidades, cada una de las cuales contiene un grupo hemo, una estructura orgánica que alberga en su centro un átomo de hierro. Ese átomo de hierro es quien se une al oxígeno. Cuando la sangre pasa por los alveéolos pulmonares, donde la presión parcial de oxígeno es alta, el hierro de cada grupo emo atrapa una molécula de oxígeno.
La hemoglobina se convierte en oxiemoglobina y la sangre adquiere ese color rojo brillante que todos asociamos con la sangre arterial bien oxigenada. Cuando esa misma sangre llega a los tejidos del cuerpo, donde el oxígeno es escaso y el dióxido de carbono es abundante, el proceso se invierte, el oxígeno se libera, una parte del dióxido de carbono se une a la hemoglobina, mientras que la mayor parte es transportada [música] en el plasma en forma de bicarbonato y la sangre regresa a los pulmones de color rojo oscuro, lista para comenzar el ciclo de nuevo, lo que hace de este mecanismo algo verdaderamente mente notable no es solo su eficacia, sino su sensibilidad. La hemoglobina no transporta oxígeno de manera uniforme ni estática.
Su afinidad por el oxígeno varía en función de las condiciones del entorno: temperatura, pH, concentración de dióxido de carbono y la presencia de una molécula pequeña llamada 2,3 bisfófoglicerato. Cuando un músculo trabaja intensamente produce más calor y más dióxido de carbono, mientras el pH local disminuye. Todos estos factores reducen la afinidad de la hemoglobina por el oxígeno, lo que significa que en ese músculo fatigado, el glóbulo rojo libera más oxígeno que en los tejidos en reposo.
No necesita recibir una señal externa, [música] no espera instrucciones, responde directamente a las condiciones químicas de su entorno. Este fenómeno conocido como el efecto Bore [música] es uno de los ejemplos más elegantes de regulación biológica automática que existe en la fisiología humana. El ciclo de vida de un glóbulo rojo comienza mucho antes de que entre en circulación.
Su origen está en la médula ósea roja, ese tejido esponjoso que habita en el interior de los huesos planos como el esternón, las vértebras y los huesos de la pelvis. Allí, a partir de células madre hematopoyéticas, se inicia un proceso de maduración que dura entre 5 y 7 días y que transforma gradualmente una célula con núcleo capaz de dividirse [música] y producir proteínas. En el disco bicóncavo sin núcleo que reconocemos como eritrocito maduro.
Este proceso se llama eritropoyesis y está regulado principalmente por una hormona producida en los riñones llamada eritropoyetina. [música] Cuando los riñones detectan que el nivel de oxígeno en la sangre ha disminuido, liberan más eritropolyetina, que viaja por el torrente sanguíneo hasta la médula ósea y acelera la producción de nuevos glóbulos rojos. Es un sistema de retroalimentación tan preciso que ha servido de modelo para comprender muchos otros mecanismos reguladores del cuerpo.
Una vez en circulación, el glóbulo rojo tiene una vida útil de aproximadamente 120 días. En ese tiempo recorrerá el cuerpo miles de veces sometido a la presión mecánica del flujo sanguíneo, al estrés de atravesar capilares microscópicos y al desgaste inevitable de una célula que no puede producir nuevas proteínas para reparar los componentes que se deterioran con el tiempo. Cuando el eritrocito envejece, su membrana se vuelve más rígida, pierde su capacidad de deformación y comienza a presentar en su superficie señales moleculares que los macrófagos del vaso y del hígado reconocen como marcas de senescencia.
Esos macrófagos engullen al glóbulo rojo desgastado y lo descomponen. La hemoglobina se degrada, las proteínas se reciclan, el hierro se recupera y se reutiliza para fabricar nuevas moléculas de hemoglobina. Y la parte orgánica del grupo hemo se convierte en bilirubina que el hígado procesa y elimina a través de la bilis.
Es un ciclo de reciclaje biológico de una eficiencia sorprendente. Prácticamente nada se desperdicia. La producción de eritrocitos en un cuerpo adulto sano es continua y masiva.
Se generan aproximadamente 2 millones de nuevos glóbulos rojos cada segundo. 2 millones por segundo sin interrupción durante toda la vida. Este ritmo de producción no es caprichoso.
Es necesario para compensar exactamente la cantidad de células que el vaso y el hígado destruyan en ese mismo intervalo de tiempo. El equilibrio entre producción y destrucción es lo que mantiene estable la cantidad de eritrocitos en circulación y cualquier alteración en uno de los dos lados de esa balanza tiene consecuencias clínicas visibles. Cuando la producción de glóbulos rojos cae por debajo [música] de la tasa de destrucción o cuando la hemoglobina no funciona correctamente, el resultado es la anemia, una condición en la que los tejidos del cuerpo no reciben suficiente oxígeno.
Los síntomas [música] son consecuencia directa de esa privación: fatiga, palidez, dificultad para respirar, mareos, incapacidad para mantener la concentración. Hay decenas de tipos distintos de anemia. cada uno con una causa diferente, pero todos comparten esa misma raíz, una insuficiencia en la capacidad del sistema eritrocitario para satisfacer las demandas de oxígeno del organismo.
Entre las enfermedades que afectan a los glóbulos rojos, pocas revelan con tanta claridad la relación entre estructura [música] y función, como la anemia de células falsiformes. En esta condición, una mutación en un único nucleótido del gen que codifica una de las cadenas de la hemoglobina produce una versión alterada de la proteína llamada hemoglobina S. Cuando la hemoglobina S libera su oxígeno, tiende a formar polímeros rígidos en el interior del eritrocito.
Estos polímeros distorsionan la célula transformando el disco bicóncavo flexible en una forma alargada y rígida que recuerda a una os media luna. Los eritrocitos falsiformes no pueden deformarse para atravesar los capilares. Los obstruyen y provocan episodios de vaso oclusión, además de destruirse [música] mucho más rápido que los eritrocitos normales.
Una sola mutación en una única posición del genoma basta para desestabilizar toda la arquitectura del sistema de transporte de oxígeno. es uno de los ejemplos más citados en biología molecular para ilustrar cuánta consecuencia puede tener un cambio [música] aparentemente mínimo en una secuencia genética. Pero los glóbulos rojos guardan aún otro nivel de complejidad que la mayoría de las personas desconoce, el sistema de grupos sanguíneos.
La superficie de los eritrocitos está cubierta de proteínas y carbohidratos [música] que actúan como marcadores de identidad molecular. Hay más de 300 sistemas [música] de grupos sanguíneos reconocidos, aunque los más conocidos son el sistema AB O y el sistema RH. Estos marcadores determinan la compatibilidad entre donantes y receptores en las transfusiones.
Si el sistema [música] inmunitario detecta glóbulos rojos con marcadores que no reconoce como propios, los ataca produciendo reacciones que pueden ser fatales. Lo que llamamos tipo de sangre. [música] Es en realidad un mapa molecular de la superficie del eritrocito, una especie de firma biológica que el sistema inmunitario lee con una precisión que supera cualquier tecnología que hayamos desarrollado.
La investigación en torno a los glóbulos rojos continúa abriendo preguntas que aún no tienen respuesta definitiva. Durante décadas se asumió que los eritrocitos [música] eran actores pasivos en la fisiología del oxígeno, simples transportadores que cargaban y descargaban según las condiciones del entorno. Pero la evidencia acumulada en los últimos años sugiere que los glóbulos rojos podrían participar de manera más activa en la regulación del flujo sanguíneo local.
Estudios indican que los eritrocitos son capaces de liberar pequeñas [música] cantidades de ATP y posiblemente de modular la disponibilidad de óxido nítrico en respuesta a condiciones de baja tensión de oxígeno. Estas señales actuarían sobre las células musculares de las paredes vasculares para provocar vasodilatación y aumentar el flujo sanguíneo precisamente donde más se necesita. Si esta función reguladora se confirma plenamente, implicaría que el glóbulo rojo no es solo un transportador, sino también un sensor y un modulador activo de la circulación.
Los científicos continúan investigando los mecanismos exactos y el alcance real de este papel en la fisiología humana. También hay investigación activa en torno a la longevidad del eritrocito y los factores que aceleran su envejecimiento. Se sabe que el estrés oxidativo, la exposición a ciertas toxinas y diversas enfermedades pueden reducir la vida útil del eritrocito muy por debajo de los 120 días normales.
Comprender con exactitud qué señales moleculares determinan cuando un glóbulo rojo es demasiado viejo para seguir circulando es un problema [música] que tiene implicaciones directas en medicina transfusional, en el tratamiento de enfermedades hemolíticas y en el desarrollo de hemoglobina artificial para uso clínico. Hay todavía aspectos del ciclo de vida eritrocitario que no han sido completamente elucidad. Hay algo profundamente revelador en contemplar la anatomía de un glóbulo rojo con toda su complejidad.
Es una célula que ha renunciado a casi todo lo que define a una célula. Núcleo, mitocondrias, capacidad de reproducción, capacidad de reparación. Ha sacrificado su individualidad biológica en el sentido más completo para convertirse en una herramienta perfectamente optimizada [música] para una sola función.
No vive para sí misma, no se perpetúa, no produce copias de su propio código genético. Existe durante 120 días, recorre el cuerpo entero miles de veces. Entrega oxígeno a cada rincón de los tejidos, recoge el dióxido de carbono producido por el metabolismo celular y al final [música] es desmantelada con la misma eficiencia con la que fue construida y sus materiales son reutilizados para fabricar el siguiente ciclo de células.
25 billones de estructuras [música] así circulan en este momento en el cuerpo de cada ser humano adulto. Sin descanso, sin error significativo, sin necesidad de instrucción consciente. Es fácil olvidar que la vida, en su expresión más cotidiana, depende de algo tan pequeño que es invisible a simple vista, que cada movimiento, cada pensamiento, cada latido del corazón.
[música] Es posible porque un disco bicóncavo de 7 micrómetros cargado de hierro y hemoglobina atraviesa un capilar más estrecho que él mismo y deposita exactamente el oxígeno que ese tejido necesita en ese instante preciso. No hay exageración en decir que el glóbulo rojo es una de las estructuras más importantes que la evolución ha producido y tampoco la hay al decir que su diseño, después de cientos de millones de años de refinamiento, es todavía difícil de superar. Lo que acabas de descubrir es solo una fracción de la arquitectura invisible que sostiene tu existencia.
El cuerpo humano guarda estructuras igual de sorprendentes, mecanismos igual de precisos, historias igual de profundas, [música] esperando ser contadas. Si este recorrido por la anatomía del glóbulo rojo te dejó con esa sensación de que el cuerpo es algo más de lo que creías, dale like a este video. Es la manera más directa de decirle a este canal que este tipo de contenido vale la pena.
Y si quieres seguir explorando la biología humana con la misma profundidad, suscríbete a Anatomía Revelada. Cada entrega es un nuevo nivel de comprensión sobre el cuerpo que habitas.